

Глава I. Генетика бактерий (Д. М. Гольдфарб)
1. Введение
За последние 15-20 лет стало очевидным, что бактерии и фаги - прекрасные объекты для изучения фундаментальных проблем генетики. Вместе с тем в течение долгого периода времени эти организмы не привлекали к себе достаточного внимания генетиков. Ошибочно считалось, что бактерии лишены дифференцированных структур, определяющих их наследственные признаки. Отсюда возникло неверное представление об обособленности бактерий и вирусов от других классов живых существ и о невозможности их использования для изучения генетических проблем. Такое негативное отношение к бактериям и вирусам подкреплялось тем, что они из-за малых размеров, лабильности признаков ограничивали возможности генетического анализа. Наконец, незнание механизмов генетического обмена у бактерий и, тем более, у вирусов не позволяло изучить организацию и структуру их наследственного аппарата.
Быстрый прогресс генетики микробов, который мы отмечаем за последнее время, обусловлен многими причинами, и в первую очередь открытием у бактерий и фагов механизмов генетического обмена.
У высших организмов обмен наследственной информации обеспечивается в процессе мейоза. У бактерий и вирусов существуют другие механизмы, а именно: трансформация, трансдукция и конъюгация. Генетический обмен у фагов осуществляется в процессе их репродукции внутри клетки. Открытие этих механизмов переноса наследственного материала в сочетании с развитием методов биохимической генетики привело к расшифровке генетической организации бактерий и вирусов.
Итоги исследований показали, что бактерии и вирусы, так же как и все организмы, обладают специализированными структурами, несущими наследственную информацию. Именно на бактериях была впервые установлена химическая природа наследственного материала, и этим самым был заложен фундамент молекулярной генетики. Как известно, последующее развитие этой новой отрасли генетики завершилось решением проблемы генетического кода. Широкое использование бактерий и фагов в генетике обогатило нас сведениями об организации наследственного материала, начиная от целого генома и кончая элементарными его единицами.
Поскольку основой всех этих и ряда других достижений было познание механизмов генетического обмена у бактерий и фагов, то мы сочли целесообразным уделить здесь наибольшее внимание вопросам, касающимся способов переноса наследственного материала у бактерий.
2. Ядерные структуры бактерий
Эквивалентом ядра клеток высших организмов у бактерий являются хроматиновые образования, описанные под различными наименованиями: "хроматиновые тельца", "бактериальное ядро", "нуклеоид", "ядерный эквивалент", или "ядерная вакуоль". Такое разнообразие обозначений возникло вследствие того, что организации генетических структур у бактерий и клеток высших организмов отличаются друг от друга.
В отличие от ядер растений и животных, бактериальный нуклеоид не ограничен дифференцированной мембраной и весьма вариабилен по форме (рис. 1). Полиморфизм нуклеоида зависит от среды, в которой находится бактерия.
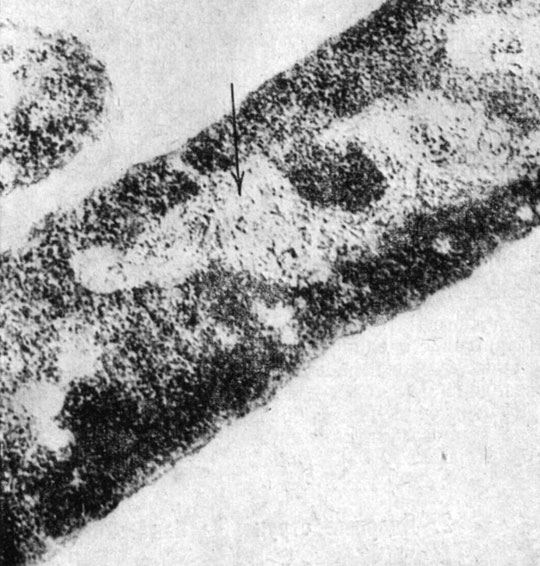
Рис. 1. Электронная микроскопия нуклеоида (отмечен стрелкой)
Цитологические наблюдения указывают, что нуклеоиды делятся в период роста бактериальной клетки. Как правило, деление нуклеоидов предшествует делению бактерии. Деление нуклеоида осуществляется путем продольного расщепления на два новых нуклеоида [1-3].
Бактериальные нуклеоиды, подобно хромосомам клеток растений и животных, содержат ДНК, которая выявляется, положительной реакцией Фельгена и специфической флюоресценцией при окраске акридином - оранжевым. Специфичность наблюдаемых цитохимических реакций подтверждается тем, что они исчезают после обработки бактерии ДНК-азой. Вероятно, вся ДНК бактериальной клетки содержится в нуклеоидах.
Для ответа на вопрос, является ли нуклеоид бактерий аналогом ядра клеток высших организмов, необходимо было доказать, что именно эти структуры хранят в себе наследственную информацию бактериальной клетки. Известно, что количество нуклеоидов в клетках Escherichia coli изменяется в зависимости от фазы роста культуры. В покоящихся бактериальных культурах каждая клетка обычно содержит один нуклеоид. Установлено, что при делении нуклеоида, ДНК которого мечена радиоактивным изотопом, половина метки оказывается в новом нуклеоиде. Следовательно, репликация ДНК в нуклеоиде происходит полуконсервативным путем и отделившийся нуклеоид содержит ту же генетическую информацию, которая была в исходном. В лаг-фазе каждая бактерия имеет два нуклеоида, а в логарифмической фазе - четыре. Отсюда следует, что мутации, индуцированные в культурах на различных этапах культивирования, будут давать в потомстве либо чистые клоны, либо смешанные; причем отношение мутантных клонов к диким зависит от количества нуклеоидов в мутировавшей клетке, что показано Виткиным [4] на примере индукции ультрафиолетом lас--мутантов (неспособность ферментировать лактозу) кишечной oпалочки, находящейся в различных фазах роста (рис. 2).

Рис. 2. Схема опыта Виткина. Индукция lac--мутаций у Е. coli: а - покоящаяся культура, клетки содержат один нуклеоид; б - культура в lag-фазе, клетки содержат два нуклеоида; в - культура в логарифмической фазе, клетки содержат четыре нуклеоида. Светлые кружки - нуклеоиды, в которых произошла мутация lac-; темные кружки - нуклеоиды дикого типа lас+ [8]
Таким образом, было подтверждено, что нуклеоид является структурой, хранящей наследственную информацию бактерии, и что каждая бактерия является гаплоидом.
3. Генетический обмен у бактерий
Генетическая организация бактериальной хромосомы была установлена в результате изучения механизмов генетического обмена между двумя бактериальными клетками. При таком генетическом обмене происходит перераспределение генетического материала между родительскими клетками, и возникающее потомство характеризуется новой комбинацией наследственных признаков. Все известные феномены обмена наследственными детерминантами у бактерий завершаются генетической рекомбинацией, а полученные в результате этого особи с новой комбинацией генов называют рекомбинантами. Описано три основных механизма обмена генетическим материалом у бактерий: трансформация, трансдукция и конъюгация.
Следует отметить, что успехи в познании генетической организации бактериальной клетки стали возможны после значительного прогресса в изучении изменчивости бактерий, разработки методов селекции бактерий и развития исследований в области бактериального мутагенеза. Поэтому, прежде чем рассмотреть указанные три феномена генетического обмена у бактерий и результаты изучения генетической организации бактериальной хромосомы, целесообразно привести некоторые данные об изменчивости бактерий и дать ряд определений, необходимых для дальнейшего изложения.
1) Генотип и фенотип бактерий
Генотипом бактерий, как и генотипом любого другого организма, обозначают совокупность генов, т. е. их генетический потенциал.
Фенотип характеризует комплекс признаков, наблюдаемых у бактерии в конкретных условиях ее существования. Таким образом, фенотип бактерии представляет собой результат взаимодействия ее генотипа и среды. Иными словами, данная генетическая детерминанта бактерии проявляется фенотипически лишь в определенных условиях внешней среды.
Например, ряд бактерий способен синтезировать ферменты, обеспечивающие ферментирование лактозы. Установлено, что этот признак обусловлен специальными генами бактериальной хромосомы. Наследственное изменение этого свойства возникает вследствие мутации хотя бы одного из генов, контролирующих этот признак. Такая бактерия не синтезирует соответствующие ферменты, независимо от присутствия углевода в среде (табл. 1).
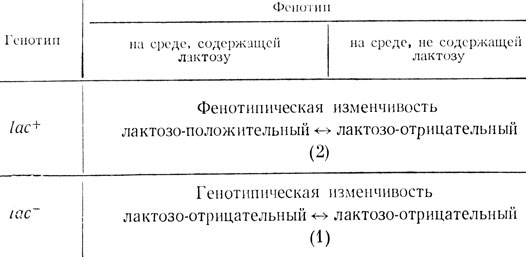
Таблица 1. Взаимоотношение между генотипами и соответствующими фенотипами
Из табл. 1 следует, что изменение способности бактерий ферментировать лактозу может быть результатом либо изменений в генетическом аппарате, либо изменений среды, в которой находится бактерия (стрелка 2). В первом случае мы говорим о генотипической изменчивости, во втором - о фенотипической, не наследуемой, изменчивости. Эта таблица иллюстрирует одно из фундаментальных положений генетики: взаимоотношение между генотипом и фенотипом зависит от условий окружающей среды.
2) Бактериальные мутации
Мутацией называют изменение генотипа, не связанное с рекомбинационным механизмом. Данное определение включает мутации, возникающие в результате внутригенных изменений, вследствие утрат генетических детерминант (делеция) или их перераспределения в хромосоме (инверсия и транслокация).
Бактериальные мутации обнаруживают по появлению наследственных (генотипических) изменений, которые могут относиться к любому из известных признаков микроорганизма. По мере расширения наших знаний, касающихся структуры, физиологии и биохимии бактерий, увеличиваются возможности обнаружения разных типов мутантов. К таким важнейшим признакам относятся:
1. Ауксотрофность к аминокислотам, т. е. неспособность бактерии синтезировать соответствующую аминокислоту. Ауксотроф растет на питательной среде в присутствии готовой аминокислоты. Микроорганизм, способный синтезировать соответствующие аминокислоты и другие необходимые для жизни соединения, называется прототрофом.
2. Ауксотрофность по пуринам.
3. Ауксотрофность по пиримидинам.
4. Ауксотрофность по витаминам.
5. Способность или неспособность бактерии утилизировать различные источники энергии.
6. Чувствительность или резистентность к различным антибактериальным веществам или зависимость от них.
7. Чувствительность или резистентность к бактериофагу.
8. Лизогенность и др.
Для обозначения мутантов предложена следующая система символов: ауксотрофность и прототрофность обозначают начальными буквами английского названия метаболита, например, потребность в гистидине - "his" или "his-", в триптофане - "try" или "try-", в аргинине - "arg" или "arg-" и т. д., прототрофность по аргинину - "arg+".
Если на генетической карте известно положение мутировавшего локуса (см. "Организация генетического аппарата у бактерий"), то к наименованию метаболита добавляют большую латинскую букву, обозначающую локус. Обозначение "his B" характеризует гистидиновый ауксотроф, мутация которого локализована в локусе В, a "his E" - ауксотроф, у которого мутация произошла в другом локусе - Е. Для дифференцирования двух мутантов в одном и том же локусе к обозначению добавляют арабскую цифру, например try D-10, try D-55, что означает 10 и 55 триптофановые ауксотрофы в локусе D.
Соответственно двойные и тройные ауксотрофы обозначают следующим образом: arg- cys- или arg cys, т. е. ауксотроф, зависимый и от аргинина, и от цистина.
Если двойной ауксотроф получен в результате двух последовательных независимых мутационных актов, то каждую мутацию обозначают тремя начальными буквами названия маркера, например, arg cys; если же он получен в результате одного мутационного события, т. е. в бактерии одновременно возникли две мутации, то такой ауксотроф обозначается двухбуквенным символом, например ph ty, т. е. бактерия, зависимая от фенилаланина и тирозина.
Способность ферментировать углеводы, например лактозу и арабинозу, обозначают lас+ и аrа+, а мутации, приводящие к неспособности ферментировать эти углеводы, - lас-, аrа-.
Чувствительность к стрептомицину описывают символом Sm-s, резистентность - Sm-r, а зависимость - Sm-d, резистентность к пенициллину - Реn-r,
Лизогенность бактерии помечают наименованием умеренного фага в скобках после названия штамма бактерии, например E. coli K12 (λ), чувствительность и резистентность к фагам - T1,5-s и Т1,5-r.
Мутирование по перечисленным признакам дает возможность, как уже указывалось, осуществить эффективную селекцию мутантов и их количественный учет.
Обычно бактериальные мутанты делят на две категории: 1) спонтанные, т. е. возникающие под влиянием факторов внешней среды, но без вмешательства экспериментатора, и 2) индуцированные, т. е. возникающие в результате обработки бактериальной популяции так называемыми мутагенными агентами, к числу которых относятся различные виды радиации, температура, фаги, антибиотики и химические соединения. Разработка методов индукции и отбора бактериальных мутантов явилась важнейшей предпосылкой для расшифровки механизмов генетического обмена у микробов. Это позволило преодолеть основное препятствие, лимитирующее развитие генетики микробов, т. е. низкую частоту (порядка 10-5-10-8) получения рекомбинантных типов - особей, возникших в результате генетического обмена между двумя клетками, отличающимися друг от друга по своим генотипам. Иными словами, современная генетика микробов располагает методами генетического анализа с высокой разрешающей способностью. Это дало возможность открыть новые механизмы и закономерности процесса генетических рекомбинаций, изучение которых было малодоступно у организмов, размножающихся половым путем и обладающих сложноорганизованным ядром.
3) Трансформация
Процессы генетической рекомбинации у бактерий, как и у других организмов, предусматривают существование механизмов переноса генетического материала из одних клеток в другие, отличающиеся своим генотипом. Одним из таких механизмов является трансформация наследственных признаков у бактерий, обусловленная введением в клетку чужеродной ДНК. В трансформации участвуют бактерия-донор, являющаяся источником ДНК, и бактерия-реципиент, воспринимающая ДНК донора.
Феномен трансформации бактерий был описан еще в 1928 г. Гриффитсом [5] при изучении природы вирулентности пневмококка.
Гриффите превратил бескапсульный авирулентный вариант одного типа пневмококка (R-форма) в другой, вирулентный тип, обладающий капсулой (S-форма). Такую наследственно фиксированную трансформацию пневмококков Гриффите наблюдал в опытах in vivo. Мышам подкожно вводилось небольшое количество жизнедеятельных клеток R-пневмококка и большое количество 5-пневмококков, убитых нагреванием.
Постмортально от этих мышей выделяли капсульный вирулентный пневмококк S-типа.
Наблюдения Гриффитса были подтверждены другими исследователями, и очень скоро было показано, что трансформацию можно индуцировать in vitro.
Весьма важным было наблюдение Сиа и Даусона [6], которые установили, что очищенный пневмококковый полисахарид, входящий в капсулу, не индуцирует превращение R-типа в S.
Далее Алловей [7] показал, что превращение R-пневмококков в S происходит in vitro в присутствии бесклеточных экстрактов S-типа. Таким образом, в результате этих работ, выполненных до классического исследования Эвери с сотр. [8], стала очевидной возможность изменения наследственных признаков микроба как in vivo, так и in vitro в присутствии бактерии-донора или продуктов ее разрушения. Однако природа факторов, индуцирующих трансформацию бактерий, оставалась неизвестной.
1944 год - год публикации исследования Эвери с сотр. [8] - явился переломным этапом в современной генетике и молекулярной биологии. Этим авторам удалось установить химическую природу трансформирующего фактора (ТФ) пневмококков и показать что им является дезоксирибонуклеиновая кислота. Огромное значение этого открытия и то влияние, которое оно оказало и оказывает до сих пор на развитие генетики и молекулярной биологии, заключается в том, что понятия "генетическая детерминанта", "фактор наследственности", "ген" приобрели конкретное химическое содержание, а это, в свою очередь, послужило основой для развития новых идей молекулярной и биохимической генетики. Основной вывод Эвери и его сотрудников о том, что ТФ идентичен ДНК, основан на следующих фактах.
Конечный продукт, обладавший трансформирующей активностью, выделенный из экстрактов пневмококков, давал положительную реакцию с дифениламином и отрицательные реакции на белок и РНК. Серологические тесты подтвердили чистоту полученных препаратов, так как они не давали преципитации с сывороткой против пневмококка-донора. Инактивация ТФ после обработки ДНК-азой окончательно подтвердила, что его генетическая активность обусловлена ДНК. Для инактивации ТФ требовалось ничтожное количество фермента: 0,005 γ/мл полностью инактивировало препарат, а 0,001 γ/мл вызывало частичную, но явную потерю активности. Однако вывод Эвери и его сотрудников об идентичности ТФ и ДНК был подвергнут сомнению в связи с невозможностью выявления белка в трансформирующих препаратах химическими и иммунологическими методами, недостаточно чувствительными для обнаружения незначительных примесей. Чувствительность ТФ к ДНК-азе объяснялась тем, что он представляет собой нуклеопротеид, инактивация которого ферментом связана с разрушением комплекса. Для окончательного выяснения истинной природы ТФ, начиная с 1944 г., было проведено большое число исследований, результаты которых сводятся к следующему:
1. Очистка ТФ от примесей белка, РНК и полисахаридов не сопровождается снижением биологической активности. Хочкис показал, что количество белка в трансформирующем факторе пневмококка составляет всего 0,02% (см. Заменгофф [9]).
Заменгофф [9] приводит расчет, согласно которому количество примесей белка в ДНК, выделенной из Hemophilus influenzae и необходимой для трансформации одной клетки, приблизительно равно 6 молекулам с весом 105 и одной - с весом 106. Если такой белок является действующим веществом ТФ, то приходится признать за ним невероятно высокую активность.
Однако вопрос о наличии белковых примесей в ТФ до сих пор нельзя считать окончательно решенным, так как в приведенных выше расчетах предполагалось наличие в ТФ белков с относительно высоким молекулярным весом.
Эфрусси-Тейлор [10] указывает, что если каждая молекула ДНКТФ пневмококка соединена с одной молекулой белка, равной молекуле рибонуклеазы, то отношение белка к ДНК равно
| 14⋅103 | , | |
| 7⋅106 |
или 0 2%, т. е. в десять раз превышает количество, указанное Хочкисом, которое теоретически может присутствовать в ДНК и не обнаруживаться доступными методами. При этом допускается, что каждая молекула трансформирующего фактора находится в комплексе с молекулой белка. Необходимо подчеркнуть следующее: присутствие в ТФ следов белка ни в какой мере не подвергает сомнению, что его генетическая активность обусловлена ДНК. Значение этой гипотетической белковой части может выражаться либо в стабилизации молекул ДНК, либо в том, что белок, возможно, выполняет роль пускового фактора в гетерокаталитической активности или репликации ДНК.
2. Агенты, реагирующие с ДНК, инактивируют ТФ. Выше уже указывалось на специфическую инактивацию ТФ дезоксирибонуклеазой. Трансформирующая активность ТФ снимается также при действии ультрафиолетовых [УФ] и рентгеновых лучей, азотистой кислоты, формальдегида, аналогов иприта и др. Перечисленные агенты, как известно, характеризуются высокой мутагенной активностью. Эти результаты доказывают, что носителем генетической активности ТФ является ДНК. Наоборот, воздействия, приводящие к денатурации белков, не инактивируют трансформирующую активность. Последняя сохраняется при обработке 4M. мочевиной [10] и при действии температуры в диапазоне, вызывающем денатурацию белка. Инактивация очищенного ТФ H. influenzae начинается лишь после часовой обработки при температурах выше 81° [11] и быстро нарастает в диапазоне от 85 до 95°.
Анализ результатов этих опытов указывает на существование разных механизмов инактивации трансформирующей ДНК.
Первый вопрос, подлежавший разрешению, заключался в выяснении корреляции между трансформирующей активностью и степенью физической деградации молекулы ДНК. Молекулярный вес ТФ, определяемый по константе седиментации, вязкости растворов и другими способами, равен около 5⋅106. Близкие значения молекулярного веса были получены в опытах Флюка с сотр. [12] при бомбардировке ТФ пневмококков электронами и дейтронами. Есть основания полагать, что трансформирующая активность сохраняется при распаде молекулы ДНК на фрагменты с молекулярным весом порядка 3-5⋅105, т. е. при разделении исходной молекулы на 20 частей с разрывом приблизительно в 0,1% всех межнуклеотидных связей [13].
Литман [14] установила, что минимальный размер ДНК ТФ, при котором компетентная клетка способна его утилизировать, равен 4⋅105.
Дальнейшая деградация ДНК сопровождается потерей трансформирующей активности. Наблюдаемая при этом инактивация может быть связана либо с потерей способности трансформирующей ДНК проникать в клетку, либо же с повреждением ее генетической активности как таковой. Установлено, что энзиматически деградированная ДНК с трудом проникает в трансформабильные клетки [15]. Однако из этого нельзя было сделать заключение о протяженности участка молекулы ДНК, проникающего в клетку, который несет генетическую детерминанту и включается в процесс рекомбинации. Генетические данные указывают, что отдельный ген занимает только часть молекулы трансформирующей ДНК, т. е. в рекомбинацию включается не вся молекула.
Литман попыталась установить истинные размеры той части молекулы ДНК ТФ, которая ответственна за ее генетическую активность. Для этих целей она сопоставила химические и генетические изменения, наблюдавшиеся в ТФ пневмококка при обработке УФ и азотистой кислотой [14]. При дозах HNO2, вызывающих 99,9% инактивации активности пневмококкового ТФ, дезаминировалось от 10 до 15% гуанина и 1-2% аденина. Дезаминирование цитозина в условиях этих опытов не было выявлено. Исходя из предположения о том, что каждое дезаминирование любого из этих двух оснований обусловливает наблюдавшийся биологический эффект, Литман определяет размер инактивированного участка в 150-200 пар оснований.
Остается неясным, за какой этап трансформации ответственна эта чувствительная область ДНК пневмококкового ТФ. Необходима ли она для эффективного спаривания, т. е. для объединения ДНК реципиента с фрагментом ДНК донора, для рекомбинации или же для осуществления других фаз реакции трансформации. Во всяком случае, очевидно, что в зависимости от степени деградации трансформирующего фактора могут быть нарушены по крайней мере два механизма: первичный этап трансформации, т. е. проникновение ДНК в клетку, и последующие фазы реакции, развертывающиеся внутри клетки.
3. Индукция мутаций в результате обработки ТФ химическими мутагенами. Известно, что азотистая кислота является мутагеном, действие которого обусловлено дезаминированием азотистых оснований ДНК. Действие HNO2 на ТФ пневмококка также сопровождается индукцией мутаций. В этих опытах в качестве донора использовался штамм пневмококка, резистентный к стрептомицину, но чувствительный к оптохину и аминоптерину. ДНК донора обрабатывалась in vitro HNO2, а потом инкубировалась с клетками реципиента, которые затем высевались на селективные среды. Количество трансформантов по признаку Sm-r уменьшалось по мере удлинения времени обработки ДНК, а количество трансформантов по признакам Аm-r и 0-r увеличивалось, достигая максимума при относительно низком уровне инактивации признака стрептомицинорезистентности. Иными словами, HNO2 индуцировала мутации в изолированной ДНК донора, которые затем фиксировались в геноме реципиента.
Наследственный характер изменений генетических свойств ДНК донора подтверждался тем, что ДНК, выделенная из трансформированных клеток, была способна трансформировать по этим признакам свежий штамм реципиента.
4. Активность денатурированной и ренатурированной ДНК трансформирующего фактора. Одним из важнейших доказательств природы ТФ являются результаты опытов с денатурированной и ренатурированной ДНК. Напомним, что денатурация заключается в разделении двунитчатой молекулы ДНК на отдельные полинуклеотидные нити. Такое разделение происходит вследствие разрыва водородных связей, объединяющих две полинуклеотидные цепочки. Денатурация может быть вызвана температурой в диапазоне 85-100°, снижением рН до 2,5, или повышением его до 12,0, действием 8 М мочевины или 95%-ным формальдегидом.
Две изолированные полинуклеотидные нити, полученные при тепловой денатурации, можно объединить в двунитчатую структуру при медленном охлаждении раствора [16, 17].
Важно подчеркнуть, что денатурация и ренатурация - процессы, специфические для двунитчатой ДНК. Это придает особое значение результатам опытов, в которых было показано, что денатурация сопровождается инактивацией трансформирующего фактора, а ренатурация - ее восстановлением [18, 19]. Объяснение низкой трансформирующей активности денатурированной ДНК мы находим в работах Роджер и Хочкиса, Лермана и Тольмаха [20, 21], из которых следует, что денатурированная теплом ДНК с трудом проникает в трансформабильную клетку.
Таким образом, на основании всей совокупности фактов, установленных при изучении процессов инактивации изолированного ТФ, приходится признать, что носителем его генетических свойств является ДНК, независимо от возможного присутствия в нем небольших количеств белка.
Некоторые факторы, определяющие эффективность трансформации
Феномен трансформации, открытый, как указывалось, у пневмококков на примере капсулообразования, вскоре был обнаружен и у других микроорганизмов в отношении различных признаков. Трансформация резистентности пневмококков к пенициллину и стрептомицину была описана Хочкисом в 1951 г. [22]; у пневмококков же была осуществлена трансформация типоспецифического М-протеина [23]. Кроме пневмококков экспериментальным объектом, широко применяемым для изучения трансформации, являются бактерии рода Hemophilus. Александер и его сотрудники трансформировали штаммы R-типа. в S-тип, а затем показали возможность индукции у этих бактерий стрептомицинорезистентности. Этими же исследователями была осуществлена трансформация у менингококков [24-26]. Перечень бактериальных видов, у которых оказалось возможным воспроизвести феномен трансформации, был дополнен В. subtilis и стрептококками [27-30].
Обычно частота трансформации различных признаков оказывается величиной порядка 1⋅10-3. Что касается данные Буавена о возможности трансформации бактерий кишечной группы, то они пока не были достоверно подтверждены. Таким образом, несмотря на то, что с момента открытия феномена трансформации у пневмококков прошло около 20 лет, количество бактериальных видов, у которых удалось воспроизвести это явление, остается довольно ограниченным. Вместе с тем нельзя не отметить, что перечень трансформабильных бактерий медленно, но безусловно расширяется. Тот факт, что трансформация обнаружена у бактерий, относящихся к различным семействам и родам, свидетельствует о распространенности среди бактерий этого феномена как механизма передачи генетической информации.
Чем же объяснить тот факт, что до настоящего времени мы располагаем относительно небольшим числом трансформабильных систем? По мере накопления наблюдений о кинетике трансформации стало очевидным, что даже различные штаммы одного и того же вида резко отличаются по своей трансформабильности. Вскоре было показано, что на эффективность трансформации влияют свойства среды, в которой осуществляется реакция. Так, трансформация пневмококков зависела от качества настоя мяса. Химическими факторами, стимулирующими трансформацию пневмококков, оказались пирофосфат [7] и сывороточный альбумин [31]. Факторы, усиливающие трансформацию, неодинаковы для различных систем. Например, трансформация Hemophilus, в отличие от пневмококка, осуществляется в сложной среде, но без добавления альбумина [32].
Ряд наблюдений привели к заключению о том, что способность клеток подвергаться трансформации определяется как свойствами среды, так и физиологическим состоянием самой бактерии. Бактерии в оптимальном для трансформации физиологическом состоянии называют "компетентными". Состояние компетентности наблюдается лишь в