

Глава III. Химический мутагенез (В. Г. Никифоров)
1. Введение
Если в природе происходит какое-либо интересное и важное явление, то человек редко удовлетворяется исследованием этого явления путем простого наблюдения. Рано или поздно наступает этап, на котором исследователь с помощью различных внешних воздействий пытается вмешаться в естественный ход событий, вызвав интересующее его явление искусственно. На первых порах ему бывает достаточно хотя бы как-нибудь повлиять на изучаемое явление, и внешние воздействия, применяемые исследователем, играют лишь роль метода исследования. Вмешиваясь в ход естественных процессов, человек всегда стремится не просто изучить их, но и научиться влиять на них в нужную для него сторону. Этим вызвано стремление найти такие внешние воздействия, применение которых являлось бы не только эффективным методом исследования, но и методом управления изучаемым явлением.
Именно по такому пути развивалось и развивается изучение мутаций. После того как было обнаружено, что стабильные единицы наследственности - гены способны изредка изменяться (мутировать), предпринимались многочисленные попытки вмешаться в этот процесс, т. е. искусственно индуцировать мутации. Впервые это удалось сделать с помощью рентгеновых лучей. Таким образом, генетики получили в свои руки мощный метод воздействия на генетическое вещество, а следовательно, и метод его исследования. Этот метод долгое время оставался единственным, так как, несмотря на неоднократные попытки, не удавалось индуцировать мутации химическими веществами. Под влиянием этого обстоятельства в 30-е годы генетическому веществу приписывали совершенно удивительную устойчивость. Тогда казалось, что оно может изменяться только под действием больших квантов энергии, вызывающих ионизацию. Однако в то же время в работах В. В. Сахарова [1] были получены первые положительные результаты по химическому мутагенезу. Сахаров индуцировал мутации у плодовой мушки, воздействуя на нее йодом. Затем в 1943 г. Олкерс нашел, что уретан (+КСl) вызывает разрывы хромосом в клетках растений [2]. В 1946 г. появилась работа Ауэрбах и Робсона [3], в которой сообщалось о мутагенном действии горчичного газа на плодовую мушку. В том же году Рапопорт индуцировал мутации у плодовой мушки с помощью формальдегида [4].
С тех пор было обнаружено много других химических мутагенов, количество которых увеличивается с каждым годом. Многие из них по своей эффективности не уступают рентгеновым лучам (рис. 1). Оказалось, что способность индуцировать мутации не является привилегией какого-нибудь одного класса химических веществ. Среди мутагенов встречаются и простые вещества типа азотистой кислоты или формальдегида и сложные органические соединения, например аналоги азотистых оснований.

Рис. 1. Мутагенная активность некоторых алкилирующих соединений в сравнении с рентгеновыми лучами [5]. Мутагенному воздействию подвергались постмейотические стадии сперматогенеза взрослых самцов плодовой мушки. Алкилирующие соединения вводились в семенники в количестве 1,5⋅10-2 М за исключением случаев, обозначенных на рисунке
При виде такого хаотического разнообразия возникает предположение о том, что мутации можно индуцировать практически чем угодно. Если последовательно развить эту мысль, то следует считать, что наследственное вещество весьма нестойко и любое воздействие, как-то "будоражащее" клетку, может привести к изменению в наследственном веществе. Если мутация действительно является таким неспецифическим ответом на внешние воздействия, то мутагены представляют незначительный интерес как метод изучения механизма мутаций, и имеется мало оснований ожидать, что с их помощью можно будет научиться управлять процессом возникновения мутаций. Такой крайне пессимистический взгляд, по-видимому, неверен. Сейчас накапливается все больше данных, свидетельствующих о том, что между химическими свойствами мутагена и характером вызываемых им генетических изменений наблюдается определенная специфическая связь. Прежде чем перейти к обсуждению данных такого рода, мы кратко ознакомимся с типами мутаций и с химическими свойствами мутагенных веществ.
2. Классификация наследственных изменений
Мутации отличаются друг от друга как по характеру изменения наследственного материала, так и по последствиям этих изменений, т. е. по характеру изменения фенотипа. Различают следующие виды мутаций: изменение кариотипа, хромосомные аберрации и генные мутации.
Изменением кариотипа называют изменение числа хромосом в ядре (гаплоидность, полиплоидность, анеуплоидность).
Хромосомные аберрации подразделяются на:
Разрывы хромосом.
Нехватки, или делеции. В результате такой мутации теряется участок хромосомы.
Дупликации, приводящие к удвоению участка хромосомы.
Инверсии. При инверсии участок хромосомы меняет свою ориентацию. Предполагается, что инверсия наступает после двух разрывов одной хромосомы, когда внутренний участок хромосомы разворачивается на 180° и разрывы воссоединяются.
Транслокации. При транслокации участки хромосом обмениваются местами. Такой обмен может произойти в результате контакта двух гомологичных или негомологичных хромосом, при котором возникают разрывы, после чего разорванные концы хромосом соединяются по-новому.
Генные мутации. При изучении высших организмов было принято называть генными, или точечными мутациями изменения, локализованные в определенной точке хромосомы, но не приводящие к заметному изменению в ее структуре. По такому определению множество мутаций попадает в одну группу только на том основании, что разрешающая сила методов исследования не позволяет установить характер изменения генетического материала. Поэтому естественно ожидать, что данная группа будет очень неоднородной и в нее попадут различные типы мутаций. И действительно, там, где удается провести тонкий генетический анализ внутри гена, оказывается, что генные мутации, приводящие к одному и тому же фенотипическому признаку и затрагивающие один и тот же ген, могут заключаться в самых разнообразных изменениях этого гена. Поэтому нам кажется, что было бы полезным не отождествлять термины генная и точечная мутации. Мы будем называть генными мутациями любые изменения внутри гена. Ген представляет собой участок ДНК, в котором зашифрована в виде последовательности азотистых оснований наследственная информация. По такой модели генная мутация заключается в изменении последовательности этих оснований. Точечными мы будем называть только те генные мутации, при которых изменяется одна пара оснований гена.
3. Химические свойства мутагенных веществ
Можно выделить следующие группы мутагенов: ингибиторы предшественников нуклеиновых кислот; аналоги азотистых оснований, включающиеся в нуклеиновые кислоты; алкилирующие соединения; окислители, восстановители и свободные радикалы; акридиновые красители.
Это весьма приблизительная классификация, возможно, что она не очень удачно отражает общность и различия в механизме действия мутагенов.
1) Ингибиторы предшественников нуклеиновых кислот
Эта группа мутагенов последнее время привлекает к себе большой интерес в связи с тем, что, по современным взглядам, именно ДНК играет роль наследственного материала [6-20]. Интересны они и с другой стороны. Большинство известных мутагенов являются агрессивными веществами, которые могут взаимодействовать и вызывать изменения почти во всех компонентах клетки. В связи с этим очень трудно определить, какая или какие первичные реакции, из многих возможных, ответственны за наблюдаемый биологический эффект. Многие же ингибиторы предшественников нуклеиновых кислот в химическом отношении весьма инертны; являясь структурными аналогами естественных субстратов, они блокируют активный центр фермента и не дают ему осуществлять свою функцию [21]. Поэтому подобные ингибиторы (табл. 1) могут действовать лишь на ограниченное число реакций в клетке.
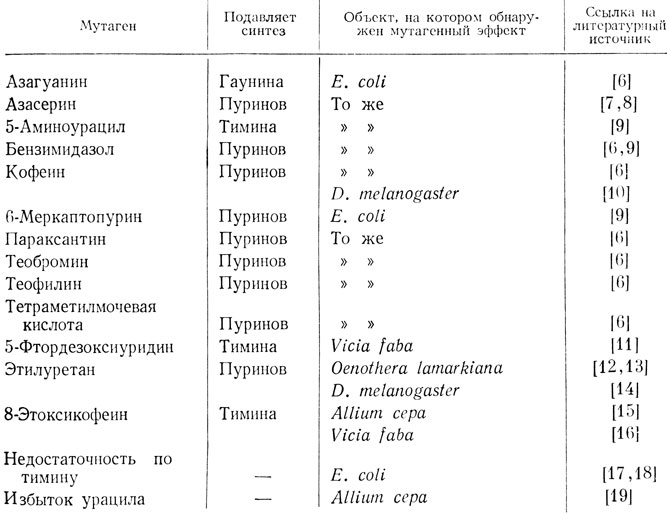
Таблица 1. Ингибиторы предшественников нуклеиновых кислот
Конечно, может быть и так, что нарушение хода лишь одной реакции будет иметь для клетки столь же далеко идущие последствия, как и изменение многих ее компонентов. Эти последствия могут быть запутанными, но в этой запутанной картине по крайней мере более ясно, какая именно причина вызвала цепь последствий.
Несмотря на большой интерес к этим мутагенам, о механизме их действия известно пока довольно мало. Считается, что в результате подавления синтеза предшественников происходят нарушения и в синтезе ДНК, которые приводят либо к изменению последовательности оснований, либо к нарушению целостности ДНК. Возможно, что подавление синтеза нормальных предшественников вызывает синтез необычных оснований, которые затем включаются в ДНК и тем самым вызывают мутации. Включение необычных оснований в ДНК было обнаружено у бактерий в условиях голодания по тимину. Этим необычным основанием оказался N-метиладенин [22].
Однако не все ингибиторы химически инертны. Так, сильный мутаген азасерин, который подавляет синтез пуринов, является в то же время алкилирующим агентом (21]. Уретан также подавляет синтез предшественников и является алкилирующим агентом. Было, однако, установлено, что в опухолях Уокера тимин (но не урацил) предотвращает развитие аномальных митозов, вызванных уретаном [23]. Поэтому можно предположить, что в этом случае именно угнетение синтеза предшественников, а не прямое алкилирование ДНК является причиной мутагенного действия уретана.
2) Аналоги азотистых оснований, включающиеся в нуклеиновые кислоты
К ним относятся галогенсодержащие аналоги тимина - 5-бром-, 5-хлор- и 5-иодурацил. Эти аналоги включаются в ДНК на места тимина. Включается в ДНК и мутагенен 2-аминопурин. Некоторые производные урацила включаются не в ДНК, а в РНК. Часть из них оказалась мутагенной для вируса табачной мозаики, в котором наследственная информация закодирована в РНК.
Лучше всего изучено мутагенное действие 5-бромурацила и 2-аминопурина. О предполагаемом механизме их действия см. ниже.
3) Алкилирующие соединения
К этому классу соединений относится большая часть известных в настоящее время мутагенов (табл. 2). По числу групп, способных вступать в реакцию алкилирования, различают моно-, би- и полифункциональные алкилирующие соединения. Реакция алкилирования заключается в том, что алкильная группа замещает водород, присоединенный к нуклеофильному, т. е. слегка отрицательно заряженному центру. Большинство биологически важных реакций алкилирования происходит путем присоединения алкильной группы через кислород, азот или серу. Роль алкильных групп могут играть разнообразные органические радикалы, например метил (СН3), этил (С2Н5) и т. д.
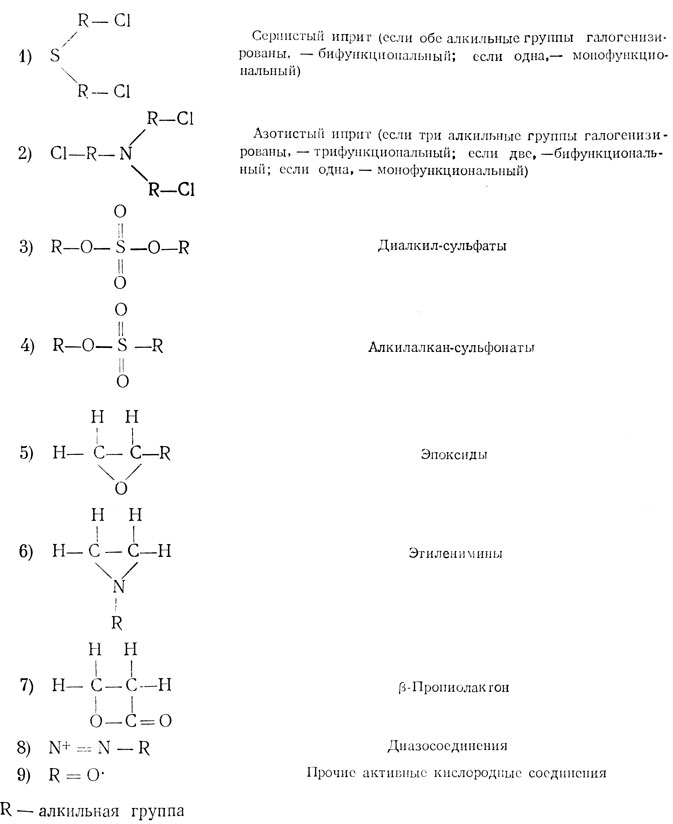
Типы алкилирующих соединений
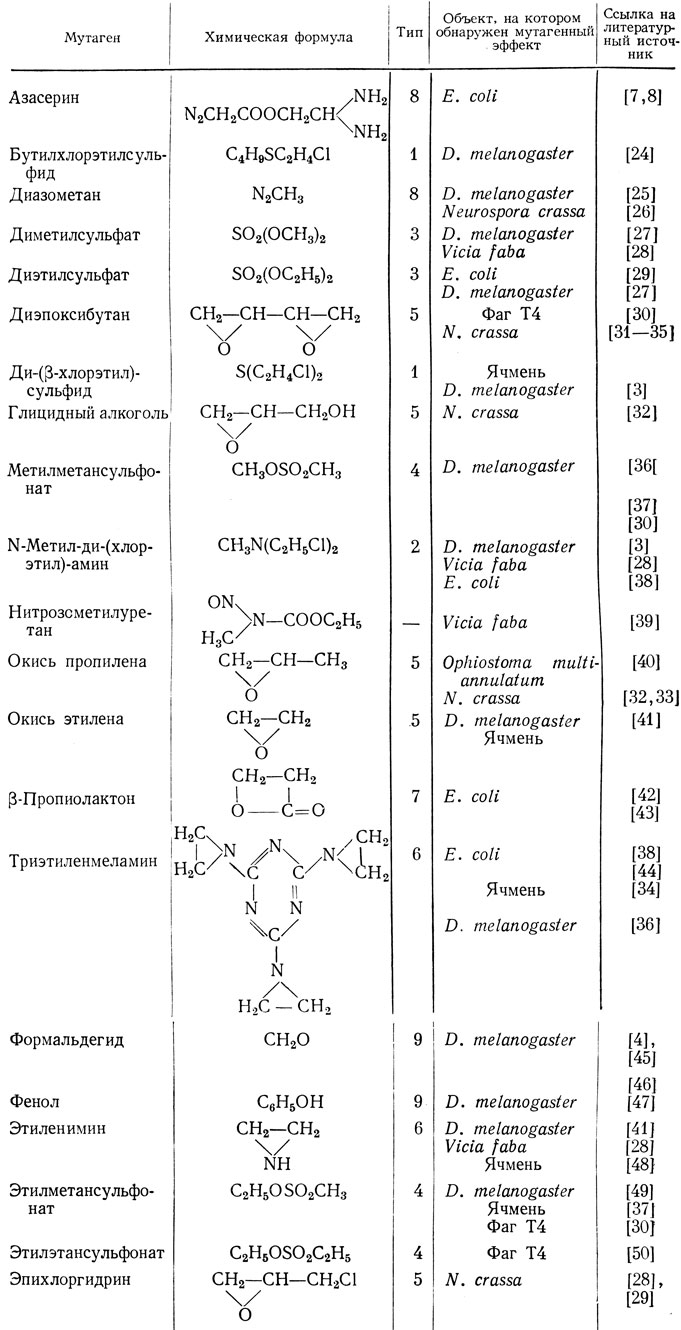
Таблица 2. Мутагенные алкилирующие соединения
Алкилирующие агенты реагируют со многими компонентами клетки, и в частности с белками, РНК и ДНК. Но и в этих веществах имеется много центров, которые могут быть алкилированы. Хорошей иллюстрацией многообразия эффектов алкилирования служит реакция с ДНК таких метилирующих и этилирующих агентов, как диметилсульфат, диэтилсульфат, метилметансульфонат (все они реагируют как монофункциональные агенты, даже если несут две алкильные группы). Эти агенты могут изменять ДНК по крайней мере пятью различными способами [20].
1. Наиболее активно алкилируются фосфатные группы. Образующийся при этом фосфатный триэстер нестабилен и обычно гидролизуется, освобождая свободную алкильную группу.
2. Фосфатный триэстер может иногда гидролизоваться между сахаром и фосфатом, в результате чего нить ДНК оказывается разорванной. Частота этого процесса в сравнении с освобождением свободной алкильной труппы неизвестна.
3. Алкилируются азотистые основания, главным образом гуанин. Возможно, что эта реакция протекает не прямо, а через трансалкилирование, когда алкильная группа переходит с фосфата на основание.
4. В результате алкилирования пуринов часто происходит гидролиз связи основания с сахаром, и пурин таким образом освобождается.
5. Депуринизация может привести к разрыву цепи ДНК, так как в отсутствие основания легче происходит гидролиз сахарофосфатной связи.
Укажем еще на одну реакцию алкилирующих соединений с ДНК. При обработке ДНК in vitro бифункциональными агентами происходит резкое уменьшение вязкости раствора. Это вызвано не разрывом молекул, как думали вначале, а тем, что бифункциональные агенты вызывают сшивки молекул ДНК между собой. Монофункциональные агенты не вызывают образования сшивок. Сшивание молекул ДНК было обнаружено и в клетках: в спермиях сельди, семги и лосося, а также в бактериях [51]. Этой реакцией иногда объясняют тот факт, что полифункциональные агенты подавляют рост раковых клеток гораздо эффективнее соответствующих монофункциональных агентов. Для индукции мутаций эта реакция, по-видимому, не играет существенной роли, так как известно много активных монофункциональных мутагенов, некоторые из которых активнее своего полифункционального аналога.
4) Окислители, восстановители и свободные радикалы
Окислителем является один из наиболее хорошо изученных мутагенов - азотистая кислота. При реакции азотистой кислоты с основаниями нуклеиновых кислот, содержащими аминогруппу, происходит окисление этой группы до азота по уравнению:
Возникшие в результате этой реакции основания отличаются от исходных по способности образовывать специфические комплементарные пары. Так, гипоксантин, получающийся при дезаминировании аденина, образует комплементарную пару не с тимином, как аденин, а с цитозином. Таким образом, на месте аденина в результате дезаминирования оказывается основание, которое ведет себя как гуанин. Предполагается, что эта замена является источником точечных мутаций, индуцированных азотистой кислотой.
Кроме дезаминирования оснований азотистая кислота образует сшивки между комплементарными нитями ДНК, что препятствует их расхождению при тепловой денатурации [52]. Поэтому весьма разумным кажется предположение о том, что при репликации участок ДНК в районе сшивки не будет скопирован, т. е. возникнет деления.
К рассматриваемой группе относятся первый открытый химический мутаген йод, ионы металлов переменной валентности, например марганца, перекиси, кислород. О химическом механизме действия этих мутагенов известно очень мало. Отчасти это объясняется тем, что они являются сравнительно слабыми мутагенами, а главным образом тем, что эти соединения очень неспецифичны и могут вступать в очень большое число реакций. Последним обстоятельством объясняется также малочисленность наших сведений о молекулярном механизме мутагенного действия свободных радикалов. Они образуются в клетке при действии ионизирующих излучений и, по-видимому, играют определенную роль в их мутагенном действии. Свободные радикалы могут возникать в клетке и без облучения, путем восстановления перекисей, которые являются естественными метаболитами. Восстановителей же в клетке всегда достаточное количество, например, аскорбиновой кислоты.
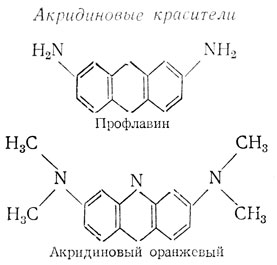
5) Акридиновые красители
Эти соединения легко образуют комплексы с ДНК и РНК. Рентгеноструктурные и оптические данные свидетельствуют о том, что акридины вклиниваются между пурин-пиримидиновыми парами двойной спирали ДНК так, что плоскость красителя перпендикулярна оси спирали. В результате этого нить ДНК растягивается и молекула ДНК удлиняется [53]. Кроме такой внутренней посадки акридины способны к внешней посадке на отрицательно заряженные фосфатные группы нуклеиновых кислот. В настоящее время предполагается, что мутагенное действие акридинов вызвано тем, что, образовав комплекс с ДНК, они мешают ее нормальной репликации; в результате этого во вновь синтезированной ДНК либо не хватает, либо оказывается лишней одна или несколько пар азотистых оснований [54].
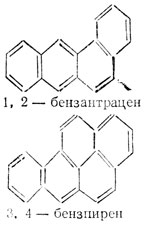
Возможно, что по механизму действия к акридинам примыкают канцерогенные ароматические углеводороды, типичные представители которых изображены ниже.
4. Специфичность мутагенов
После открытия химических мутагенов возник вопрос, отличаются ли они по характеру действия от уже известных и сравнительно хорошо изученных мутагенов - ионизирующих излучений. На первый взгляд казалось, что сходства между ними больше, чем различий, причем более всего походили на ионизирующие излучения алкилирующие соединения, которые на основании этого относятся к группе радиомиметических веществ, т. е. веществ, имитирующих действие излучений. О сходстве свидетельствуют следующие факты:
1. При помощи химических мутагенов удалось индуцировать все типы генетических изменений, которые вызываются ионизирующими излучениями (табл. 3).

Таблица 3. Генетические эффекты, вызываемые у D. melanogaster действием рентгеновых лучей и различных химических агентов [45]
Примечание. Наблюдается (+); не наблюдались (?).
2. Для многих мутагенов оказалось, что кривые "доза - эффект" имеют тот же вид, что и для радиации. Следует, однако, заметить, что из сходства кривых "доза - эффект" в данном случае нельзя сделать определенных выводов, так как химическое вещество в клетке может быть распределено неравномерно и поэтому "доза" химического вещества может не отражать его концентрацию вблизи тех молекул или структур, изменение которых приводит к мутации. Более убедительно говорят о сходстве излучений и химических мутагенов опыты, в которых изучались кривые "доза - эффект" для двух генетических эффектов, возникающих одновременно при действии горчичного газа. Речь идет о летальных мутациях, возникающих в результате разрыва хромосом в одной точке, и о транслокациях, которые возникают, если две хромосомы разорвались и обменялись оторванными кусками. Как и в случае рентгеновых лучей, частота транслокаций нарастала с дозой примерно как квадрат частоты леталей. Это следует из предположения, что леталь возникает в результате одного "удара", в то время как транслокация требует двух независимых "ударов" [55].
3. Разрывы хромосом, индуцированные химическими мутагенами, оказались похожими на разрывы, индуцированные рентгеновыми лучами. Этот вывод можно сделать на основе работы, в которой изучалось воссоединение разрывов хромосом, индуцированных ипритом, с разрывами, вызванными рентгеновыми лучами. В этой работе воздействовали на самцов плодовой мушки сначала рентгеновыми лучами, а затем ипритом, и наоборот. В обоих случаях частота транслокаций была больше аддитивной. Величина отклонения от аддитивности хорошо объяснена тем, что разрывы, индуцированные ипритом, с тем же успехом воссоединяются как сами с собой, так и с разрывами, индуцированными рентгеновыми лучами [56].
4. Было найдено, что иприты, так же как и рентгеновы лучи, более эффективны, если хромосомы предварительно облучить ближним инфракрасным светом [57].
5. В ряде случаев наблюдалось явление перекрестной устойчивости к действию химических мутагенов и радиации. Известно, что бактерии, выжившие после рентгеновского облучения в больших дозах, обладают повышенной устойчивостью к его действию. Точно так же можно получить бактерии, устойчивые к действию азотистого иприта. При этом оказывается, что бактерии, устойчивые к иприту, устойчивы также к облучению, и наоборот [58]. Как правило, устойчивость к "яду" является очень специфическим свойством, т. е. устойчивость к одному "яду" не обеспечивает устойчивости к другому. Поэтому возникновение перекрестной устойчивости свидетельствует о близком сходстве двух "ядов" [59].
Многие химические мутагены обладают сходством с радиацией и в физиологическом действии на клетку. Они вызывают обратимое слипание хромосом, а также задерживают начало митоза. Многие химические мутагены, так же как и радиация, являются канцерогенами.
Однако наряду со сходством наблюдались и существенные различия. Пожалуй, самое замечательное отличие горчичного газа от радиации, обнаруженное уже на самых ранних стадиях изучения химического мутагенеза, заключается в задержке проявления его мутагенного эффекта [60]. Задержка проявлялась в том, что после воздействия горчичным газом на плодовую мушку чаще наблюдались потомки с мозаичными участками тела, а площадь этих участков была меньше, чем после облучения рентгеновыми лучами. В случае мозаичности не все клетки тела обладают мутантным признаком. Возникает она в результате того, что мутация происходит уже после начала дробления оплодотворенного яйца. Чем позднее при этом произойдет мутация, тем меньше будет площадь тела, захваченная мозаичностью.
Задержанный мутагенный эффект наблюдался также для триэтиленмеламина, диэпоксибутана, формальдегида и некоторых других мутагенов.
Следующее отличие заключается в том, что период максимальной чувствительности клеток к действию химических мутагенов относится, как правило, к более ранним стадиям митотического цикла (рис. 2). Это было обнаружено на опухолях крыс [61], а также на растительных объектах [62].

Рис. 2. Чувствительность опухолевых клеток крысы (опухоль Уокера 266) к действию рентгеновых лучей и азотистого иприта [61]
Различия наблюдались и в чувствительности разных стадии сперматогенеза. Созревание мужских зародышевых клеток происходит следующим образом. Из исходных сперматогоний в результате серии делений развиваются сперматоциты первого порядка, обладающие диплоидным набором хромосом. Затем наступает первое мейотическое деление, в результате которого получаются гаплоидные сперматоциты второго порядка. После быстро протекающего второго деления образуются четыре гаплоидные сперматиды. Сперматиды уже без делений превращаются в зрелые спермии. Чувствительность стадий сперматогенеза изучают следующим образом. На самцов воздействуют мутагеном, затем через определенные промежутки времени их скрещивают, причем каждый раз с новыми самками. Таким образом получается несколько групп потомков одних и тех же самцов, но возникших от спермиев, находившихся в момент мутагенного воздействия на разных стадиях развития.
Для рентгеновых и γ-лучей, горчичного газа, триэтиленмеламина и некоторых других алкилирующих соединений разные стадии сперматогенеза у плодовой мушки проявили в общих чертах сходную чувствительность. Мутации (рецессивные сцепленные с полом летали) возникали с заметной частотой на всех стадиях сперматогенеза, причем зрелые спермии были более чувствительны, чем ранние сперматогоний, а пик чувствительности приходился на средние стадии: сперматиды, сперматоциты или ранние сперматогонии [5]. При воздействии рентгеновыми лучами больше всего мутаций возникало в поздних оперматидах, тогда как при воздействии горчичным газом или триэтиленмеламином - в поздних сперматогониях или ранних сперматоцитах [63].
Некоторые другие мутагены, например уретан [14], формальдегид, инъецируемый взрослым особям [64], и этилметансульфонат [49] эффективнее всего действуют на зрелые спермии; формальдегид, добавляемый в пищу (63], и хлорэтилметансульфонат [49] действуют исключительно или почти исключительно на стадии, предшествующие мейозу.
Химические мутагены отличаются от радиации еще и тем, что они, как правило, вызывают различные типы мутаций в иных пропорциях, чем радиация. В частности, при воздействии на плодовую мушку горчичным газом отношение числа хромосомных перестроек к частоте леталей, вызванных разрывами хромосом в одной точке, меньше, чем при воздействии радиации [55].
Существенное отличие заключается и в том, что ионизирующие излучения мутагенны для всех организмов, между тем известно довольно много случаев, когда вещество является активным мутагеном для одного организма, но совершенно немутагенно для другого. Например, уретан вызывает мутации у плодовой мушки, растений и бактерий, но не вызывает их у нейроспоры [65]. Такая специфичность проявляется и в его канцерогенном действии. Уретан вызывает рак легкого у мышей и крыс, но не вызывает его у кроликов и морских свинок. Частично это связано с тем, что в данном случае активным канцерогеном является не сам уретан [66], а продукт его превращения, который образуется не у всех млекопитающих. Еще более разительный пример представляет собой мутагенное действие формальдегида на плодовую мушку; когда формальдегид инъецируют взрослым особям, мутации возникают только у самцов [55].
Химические мутагены по своему действию отличаются не только от радиации, но и друг от друга; отсюда возникает вопрос о специфике действия каждого мутагена. Можно условно выделить два вида специфичности: специфичность в отношении результатов воздействия мутагена; специфичность в отношении механизма действия мутагена.
Под специфичностью в отношении результатов воздействия мы понимаем следующее. Каждую мутацию можно характеризовать вероятностью ее возникновения под действием данного мутагена, что зависит от условий обработки мутагеном, от таких факторов внешней среды, как температура, условия питания и т. д. Разные мутации под действием одного и того же мутагена при одних и тех же условиях могут возникать с различной частотой. Поэтому, чтобы детально охарактеризовать действие мутагена, необходимо знать частоты всех мутаций, которые этот мутаген способен индуцировать. Совокупность всех этих частот можно назвать спектром мутаций, или спектром действия мутагена.
Если спектры действия разных мутагенов отличаются друг от друга, то можно говорить о том, что эти мутагены имеют различную специфичность в отношении результатов действия. Если два мутагена обладают разной специфичностью, то это конечно еще не значит, что механизм их действия различен. Тем не менее изучение спектров действия мутагенов является косвенным подходом к выяснению молекулярного механизма их действия. С другой стороны, изучение специфичности в отношении результатов воздействия мутагенов имеет прямое отношение к проблеме направленного получения мутаций, т. е. индукции нужной нам мутации с частотой, превышающей или хотя бы сравнимой с суммарной частотой всех остальных (ненужных нам) мутаций. Другими словами, для получения направленного мутагенеза необходимо найти мутагены с очень узким, специфичным спектром действия.
1) Специфичность мутагенов в отношении результатов воздействия
Снять полный спектр действия мутагена даже на таком простом организме, как бактериофаг, сейчас практически невозможно. Поэтому специфичность мутагена приходится изучать лишь на отдельных участках его спектра. В соответствии с тем, на каком участке спектра и с какой разрешающей силой изучается специфичность результатов воздействия мутагена, можно выделить следующие виды этой специфичности: специфичность на хромосомном уровне (региональная специфичность); межлокусная специфичность; специфичность в отношении степени и характера поражения генетического материала; внутрилокусная специфичность: в отношении прямых мутаций (горячие точки) и в отношении обратных мутаций (аллель-специфичность).
а) Специфичность на хромосомном уровне, или региональная специфичность
Эта специфичность четко установлена в отношении разрывов хромосом растений. Большинство химических мутагенов выявляют в хромосоме "слабые области", которые чаще всего рвутся под их действием. Можно привести" такой пример. В мериетематичееких клетках корешков конских бобов (Vicia faba) имеются шесть пар хромосом: одна большая и пять малых. При γ-облучении отношение числа разрывов в большой хромосоме к числу разрывов в малых составляет 5:2. При обработке корешков ипритом это отношение равно 50:2 [67]. Цитологический анализ показывает, что разрывы, индуцированные ипритом, концентрируются в гетерохроматиновой области в районе центромеры большой хромосомы [62]. Другие химические мутагены так же рвут хромосомы растений в гетерохроматиновых областях [68, 69]. В противоположность этому, для ионизирующих излучений и для кислорода под высоким давлением не было обнаружено столь четкой избирательности действия